版本:1.0性质:根系统结构文档·枝篇层级:二级枝 → 显化链 → 记忆转移的结构辨认上级:显化链干:显化永远不等于根
摘要
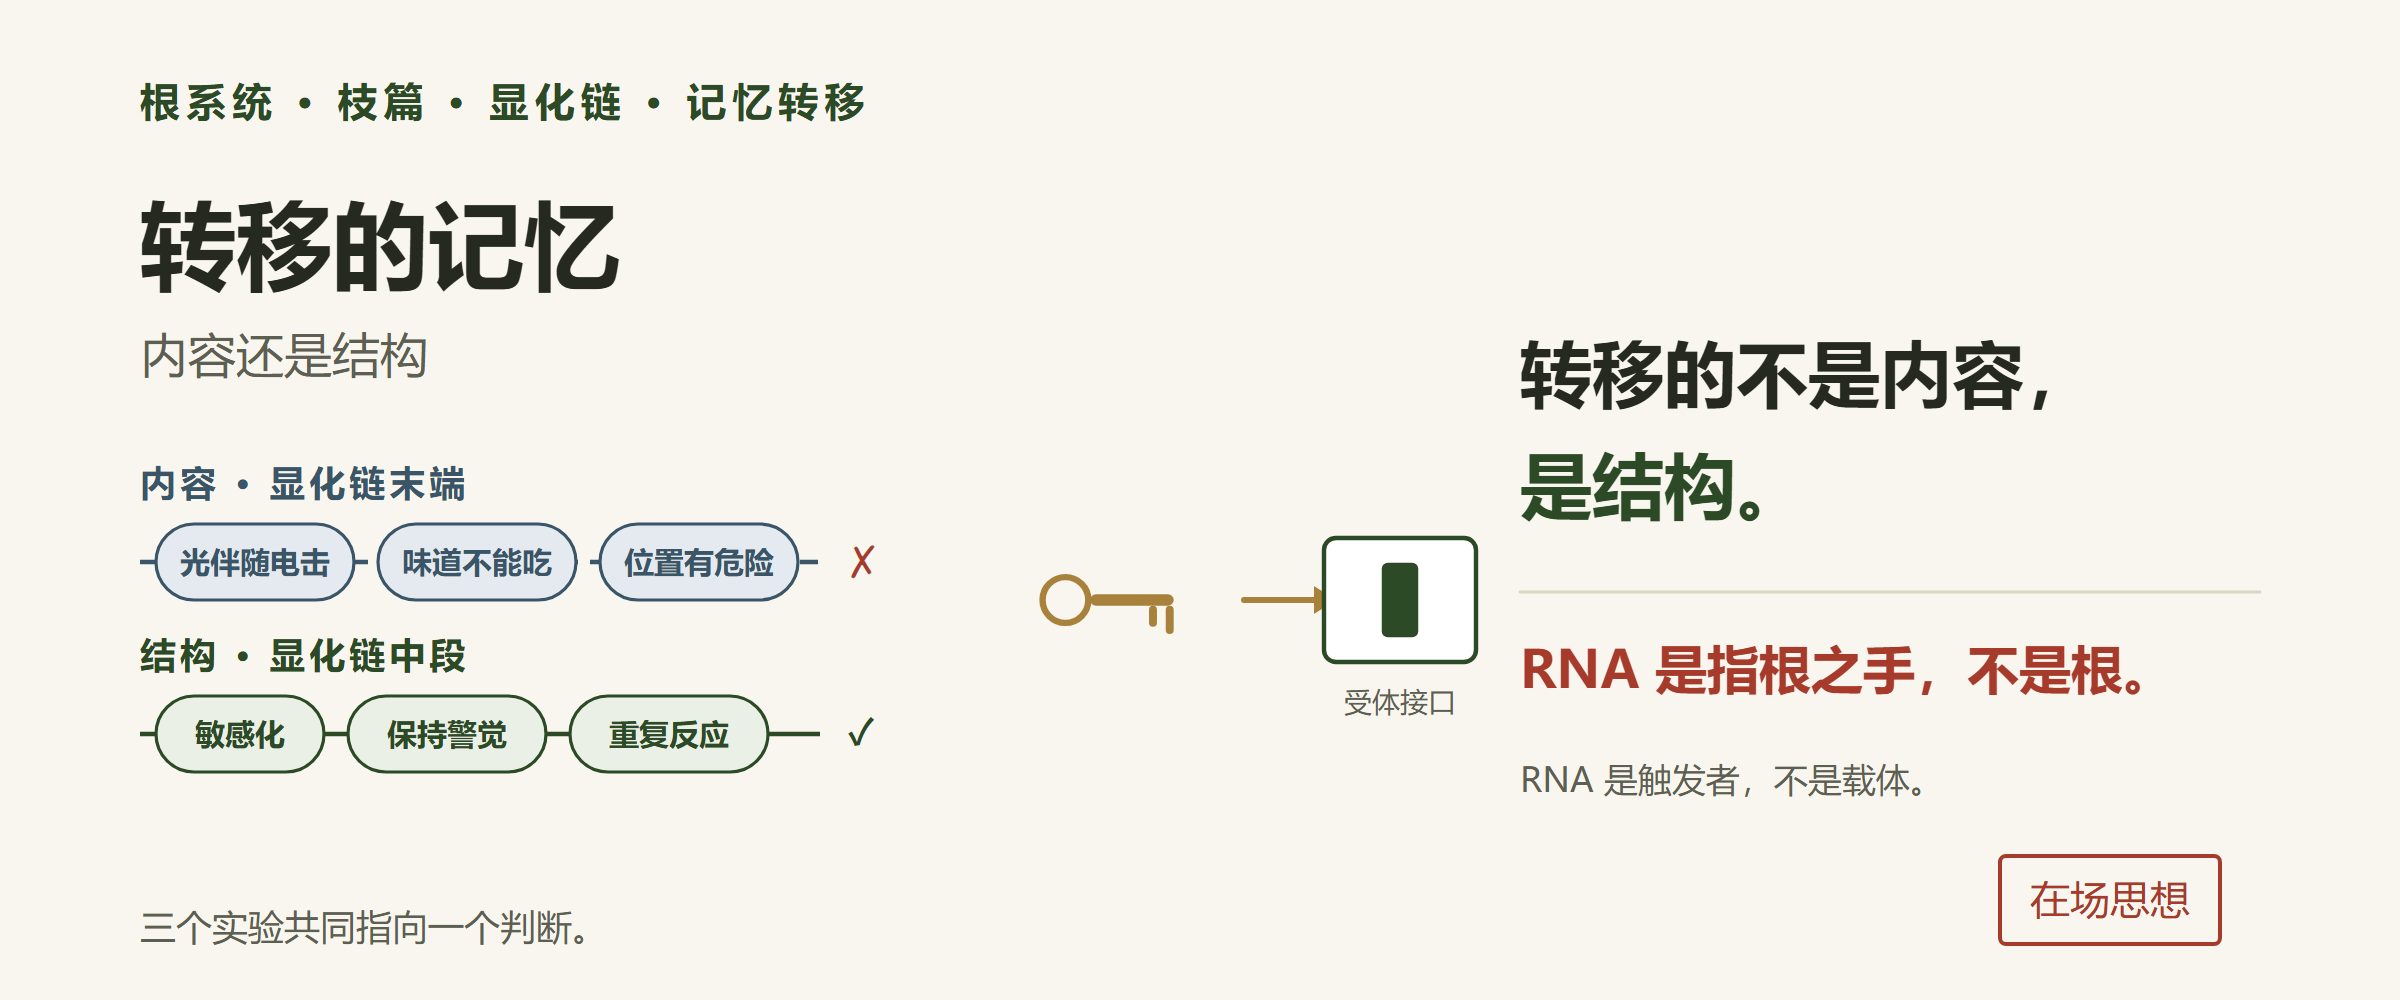
本文从根系统的显化链视角,辨认记忆转移实验中“转移的究竟是什么”。麦康奈尔涡虫实验、Shomrat & Levin涡虫复刻实验、Bédécarrats海兔RNA实验,共同指向一个结构判断:转移的不是记忆的内容,是记忆的结构方向。RNA不是内容的载体,是触发结构重组的钥匙。本文论证:记忆的“内容”是显化链末端的显化,记忆的“结构”是显化链中段的方向性。转移的是方向,不是内容。本文最后标明这一判断的边界与风险。
一、问题的提出
1.1 一个被反复追问的问题
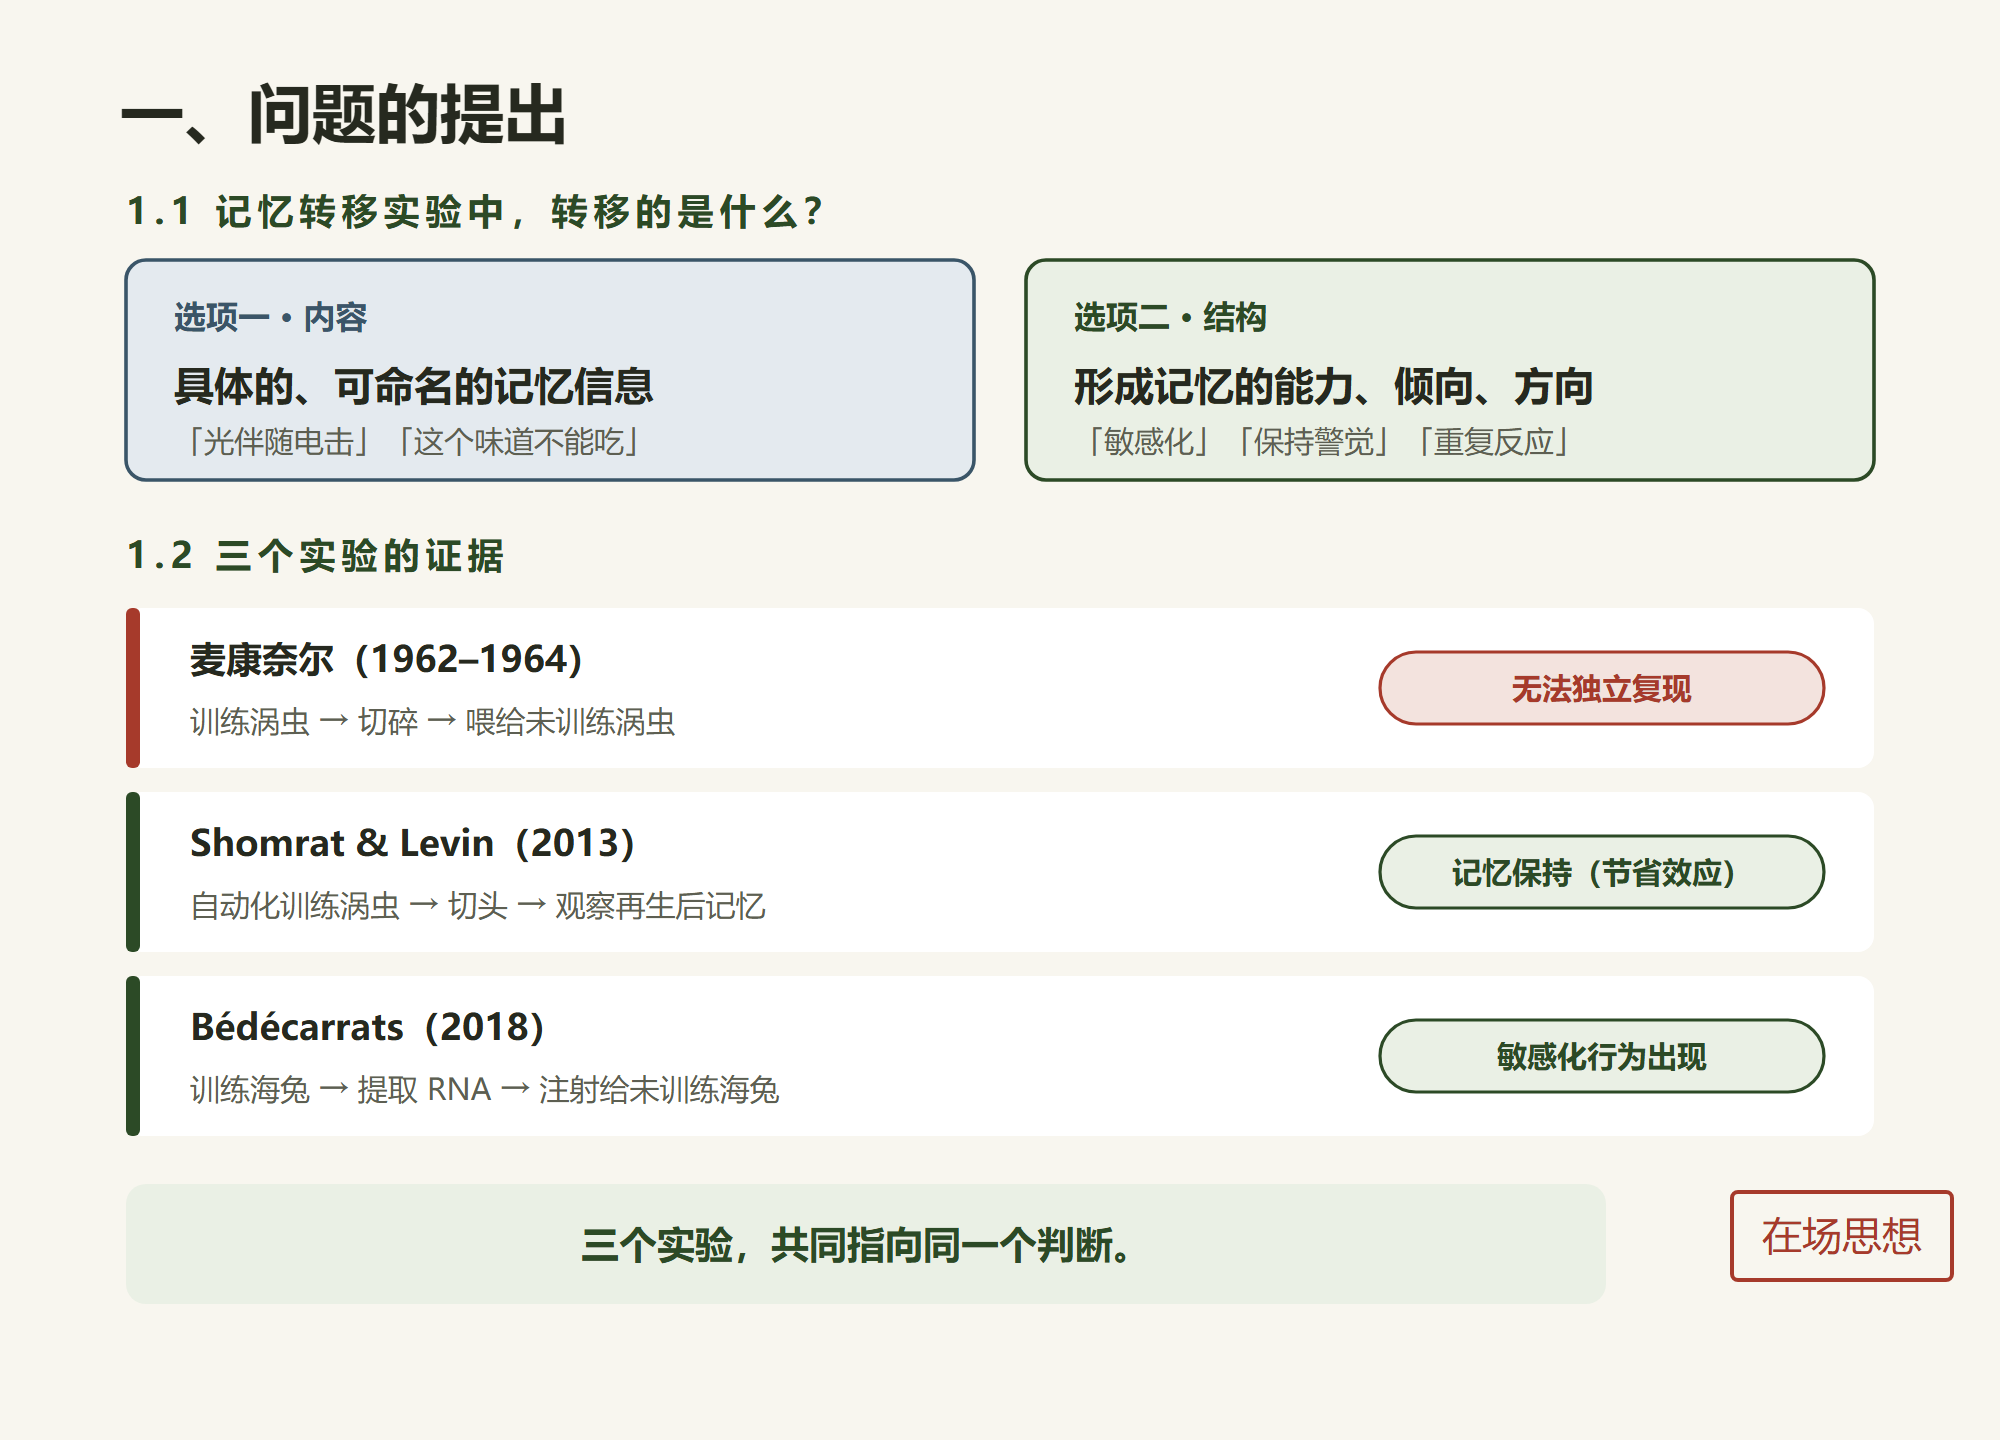
记忆转移实验中,转移的究竟是:
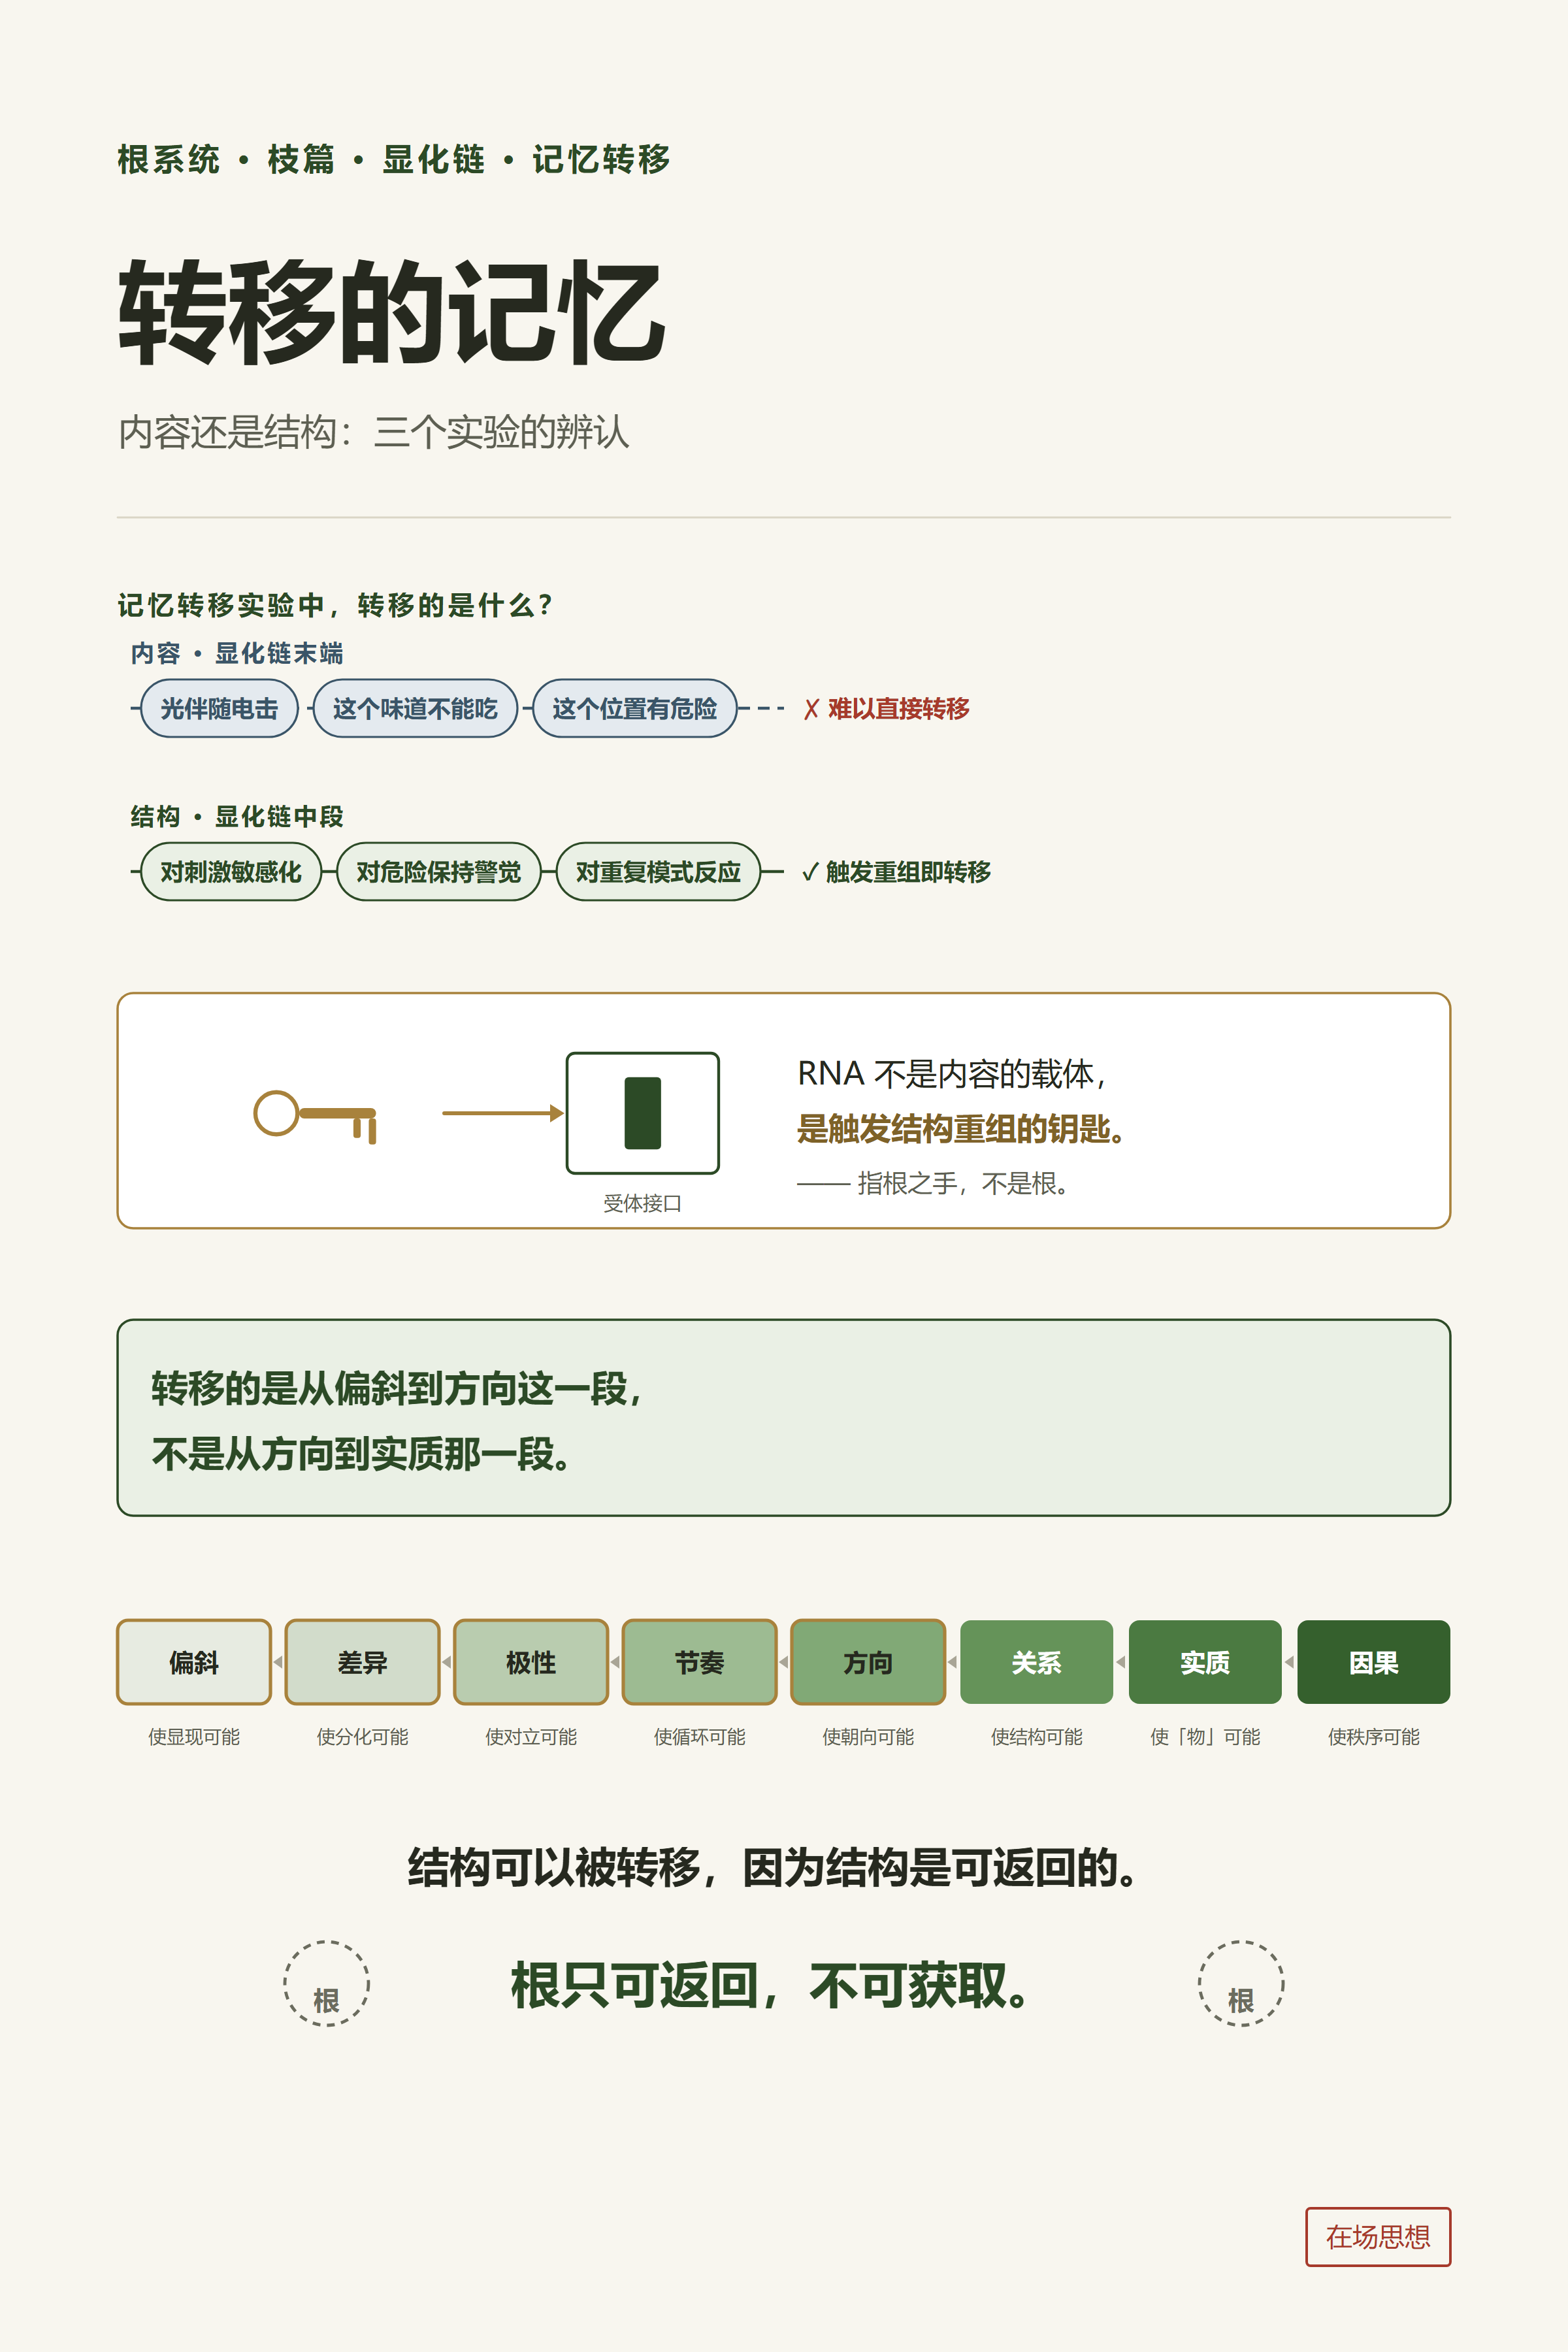
内容:具体的记忆信息(“光伴随电击”“这个味道不能吃”)?
结构:形成记忆的能力、倾向、方向(“对刺激敏感化”“对危险保持警觉”)?
这个问题直接触及根系统的核心判断:方向性先于内容。
1.2 三个实验的证据
| 实验 | 操作 | 结果 |
|---|---|---|
| 麦康奈尔(1962-1964) | 训练涡虫→切碎→喂给未训练涡虫 | 无法独立复现 |
| Shomrat & Levin(2013) | 自动化训练涡虫→切头→观察再生后记忆 | 记忆保持(节省效应) |
| Bédécarrats(2018) | 训练海兔→提取RNA→注射给未训练海兔 | 敏感化行为出现 |
三个实验共同指向一个判断。
二、内容与结构的辨析
2.1 什么是记忆的内容
记忆的内容是具体的、可命名、可描述的信息。
“这条光伴随电击”;
“这个味道不能吃”;
“这个位置有危险”。
内容对应显化链的末端:显化。
2.2 什么是记忆的结构
记忆的结构是形成记忆的能力、倾向、方向。
对刺激敏感化的方向性;
对危险保持警觉的方向性;
对重复模式保持反应的方向性。
结构对应显化链的中段:方向、关系。
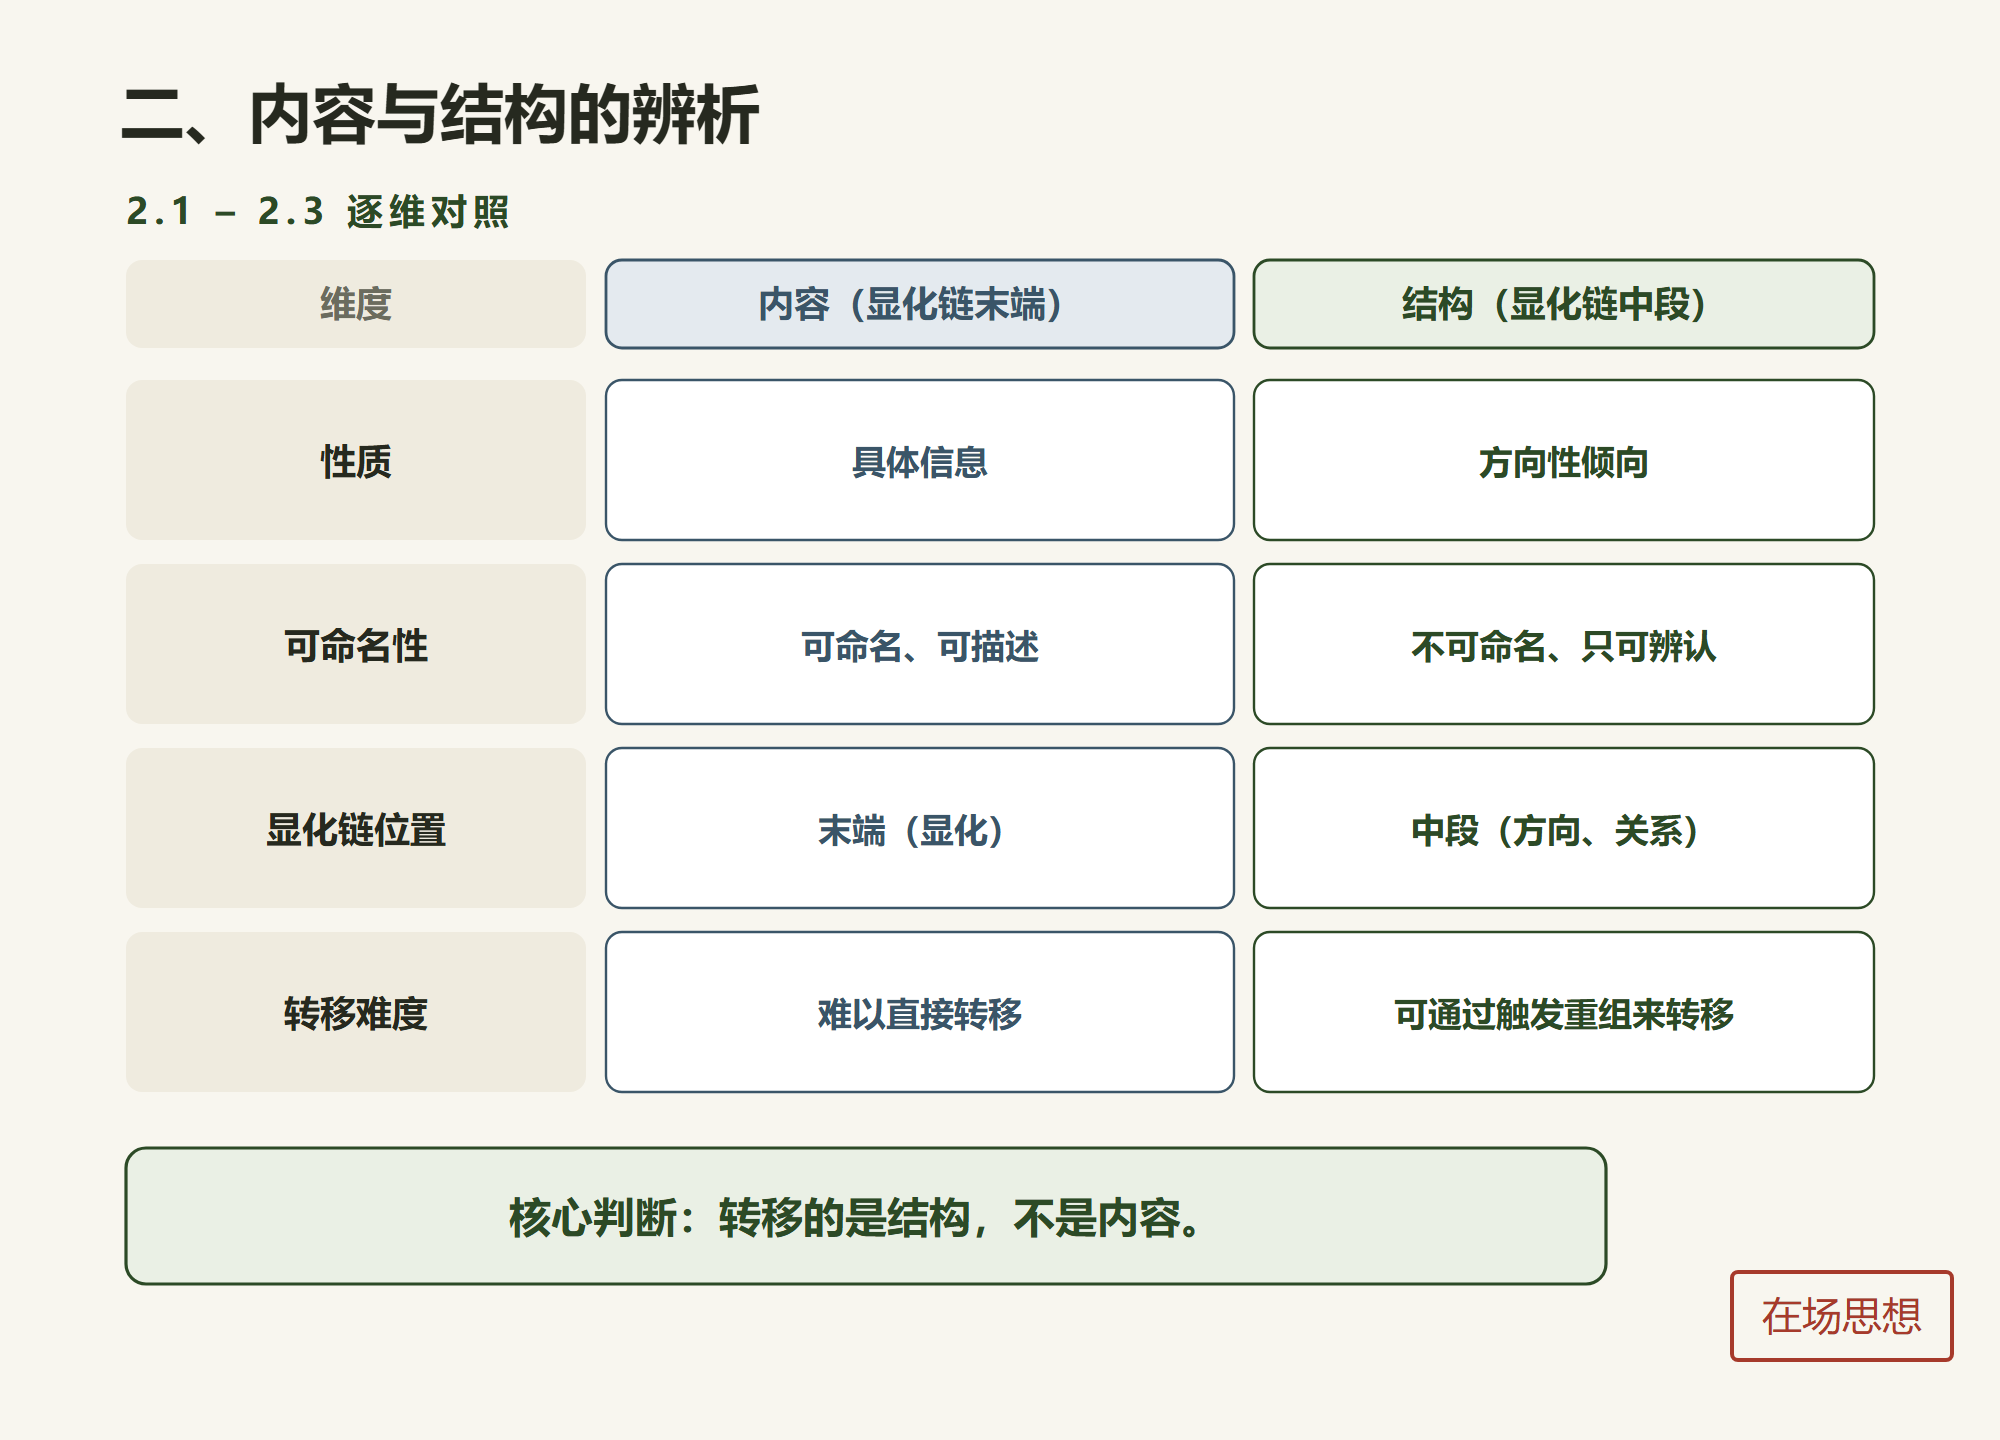
2.3 两者的区别
| 维度 | 内容 | 结构 |
|---|---|---|
| 性质 | 具体信息 | 方向性倾向 |
| 可命名性 | 可命名、可描述 | 不可命名、只可辨认 |
| 显化链位置 | 末端(显化) | 中段(方向、关系) |
| 转移难度 | 难以直接转移 | 可通过触发重组来转移 |
核心判断:转移的是结构,不是内容。
三、实验证据的逐层辨认
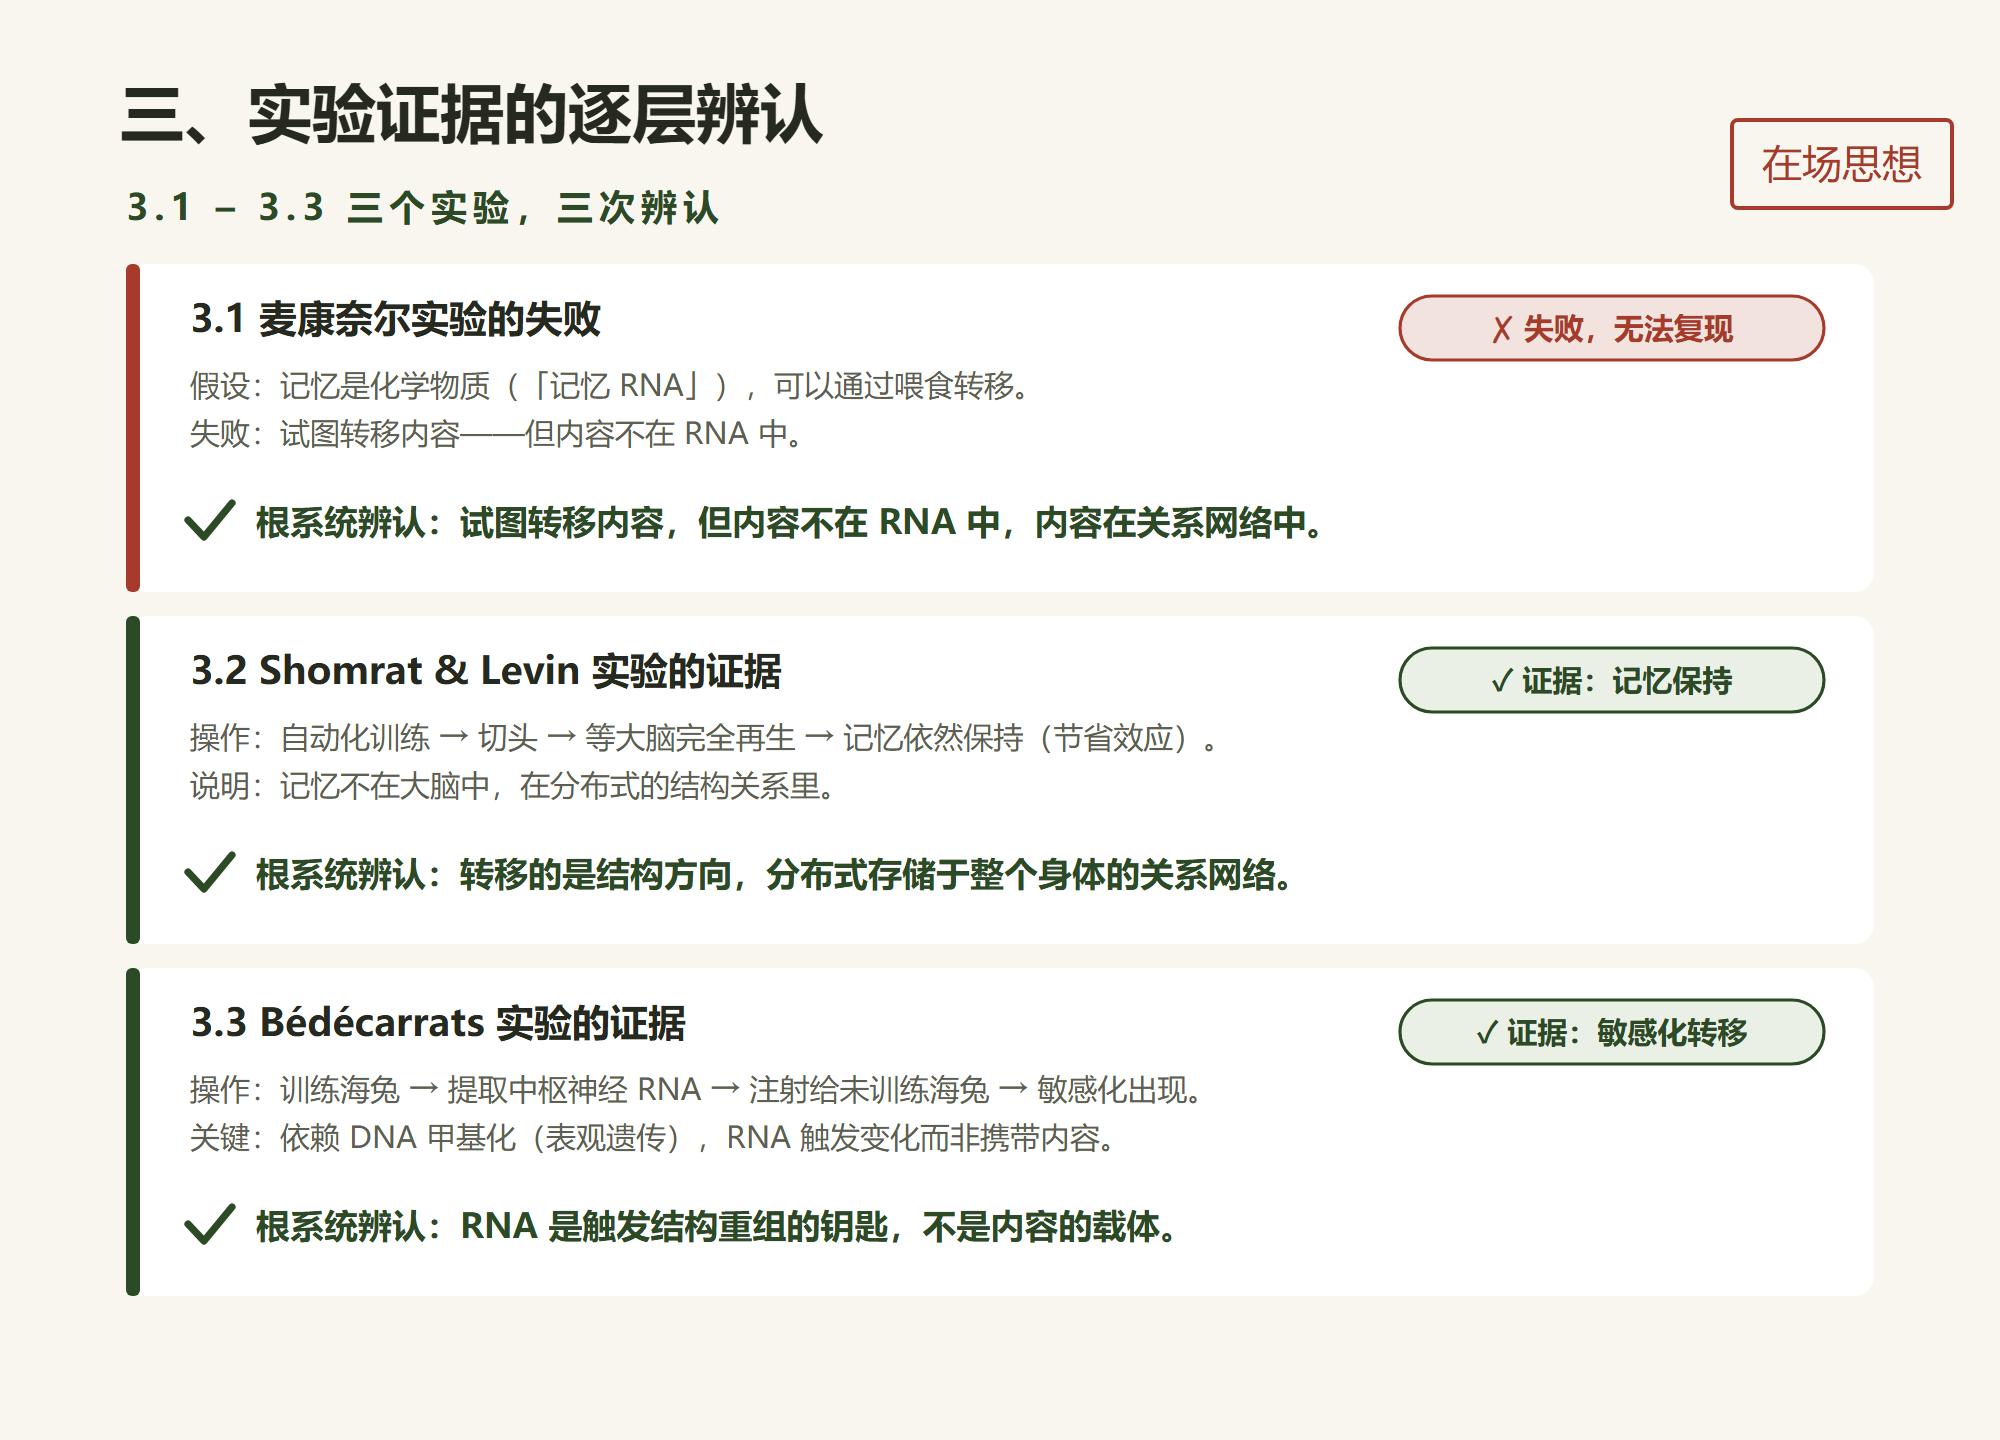
3.1 麦康奈尔实验的失败
麦康奈尔假设:记忆是化学物质(“记忆RNA”),可以通过喂食转移。
失败原因:
他试图转移的是内容(“对光的恐惧”这个具体信息);
RNA无法承载具体内容;
实验无法独立复现。
根系统辨认:试图转移内容,但内容不在RNA中。内容在关系网络中。
3.2 Shomrat & Levin实验的证据
实验操作:
自动化训练涡虫建立长期记忆;
切掉涡虫的头;
等大脑完全再生;
观察记忆是否保持。
结果:
记忆在大脑完全被替换后依然保持(节省效应);
说明记忆不在大脑中,在分布式的结构关系中;
记忆的“方向感”不依赖于某个中心化器官。
根系统辨认:转移的不是内容,是结构方向。结构方向分布式存储在整个身体的关系网络中。
3.3 Bédécarrats实验的证据
实验操作:
训练海兔建立长期敏感化;
提取海兔中枢神经系统的RNA;
注射给未训练的海兔。
结果:
接受RNA的海兔出现敏感化行为;
这一过程依赖于DNA甲基化(表观遗传机制);
RNA触发受体神经元的变化,而非携带具体记忆内容。
根系统辨认:转移的不是内容,是结构方向。RNA是触发结构重组的钥匙,不是内容的载体。
四、RNA的角色:触发结构重组
4.1 RNA不是内容的载体
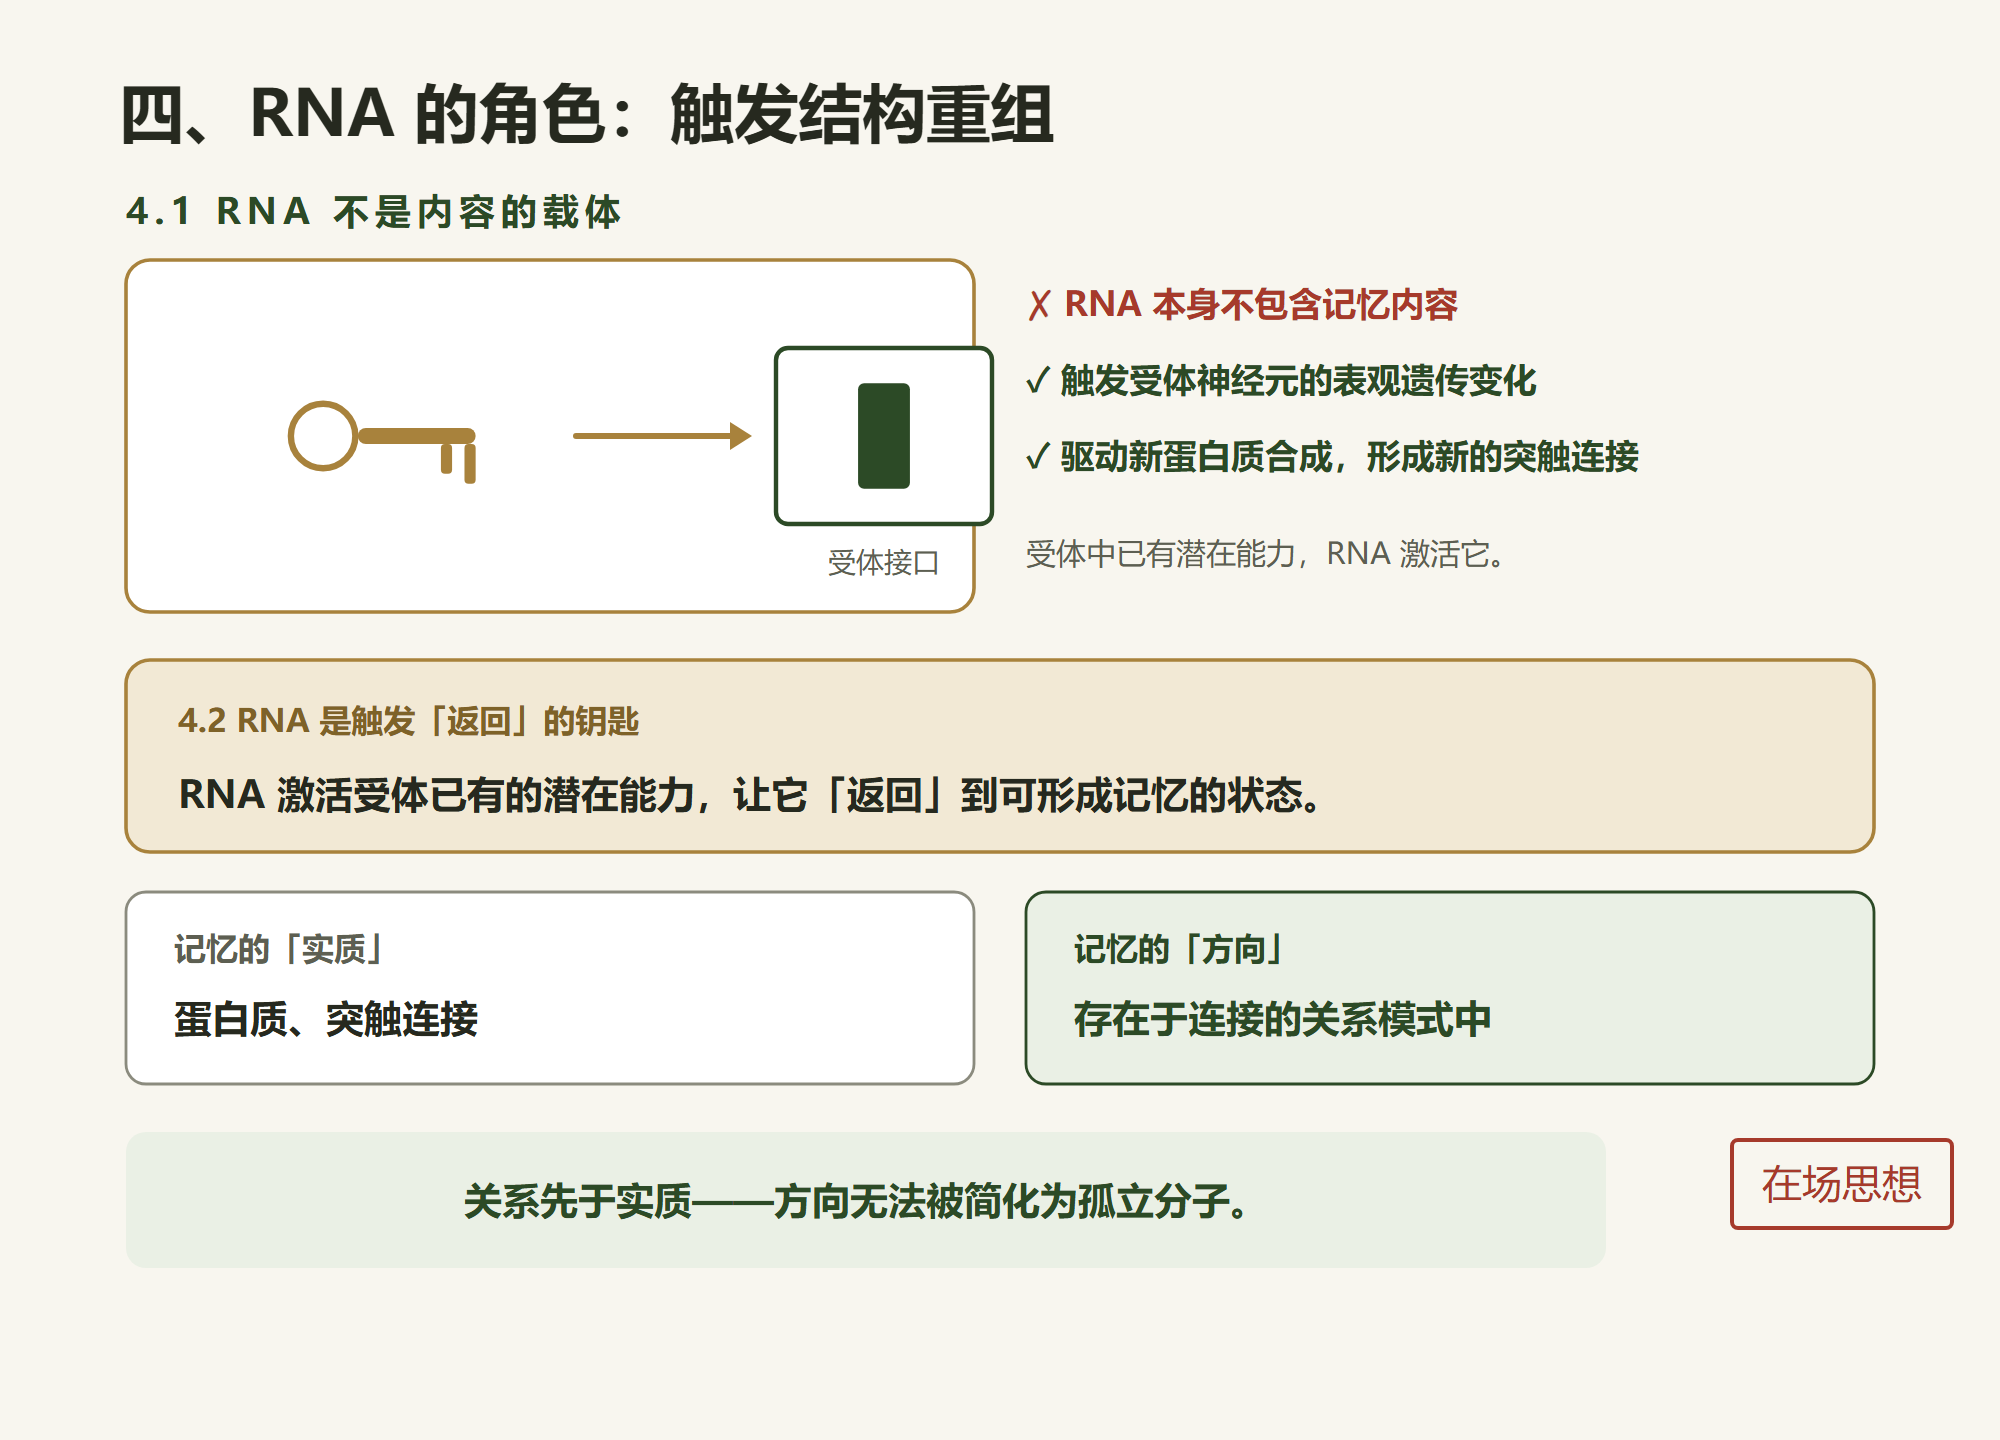
Bédécarrats实验表明:
RNA本身不包含记忆内容;
RNA触发的是受体神经元中的表观遗传变化;
表观遗传变化驱动新的蛋白质合成,形成新的突触连接。
RNA是触发者,不是载体。
4.2 RNA是触发“返回”的钥匙
根系统辨认:
RNA像一把钥匙,打开了受体神经元“感知自身状态并作出改变”的接口;
受体神经元中已经存在能够形成记忆的潜在能力(表观遗传状态);
RNA激活了这个能力,让受体神经元“返回”到一种可形成记忆的状态。
RNA是指根之手,不是根。
4.3 记忆的实质是关系
记忆的“实质”:蛋白质、突触连接。记忆的“方向”:存在于突触连接的关系模式中。
关系先于实质。 记忆的方向无法被简化为某个孤立分子。它存在于神经元之间的关系模式中。
五、显化链的印证
5.1 显化链的完整路径
text
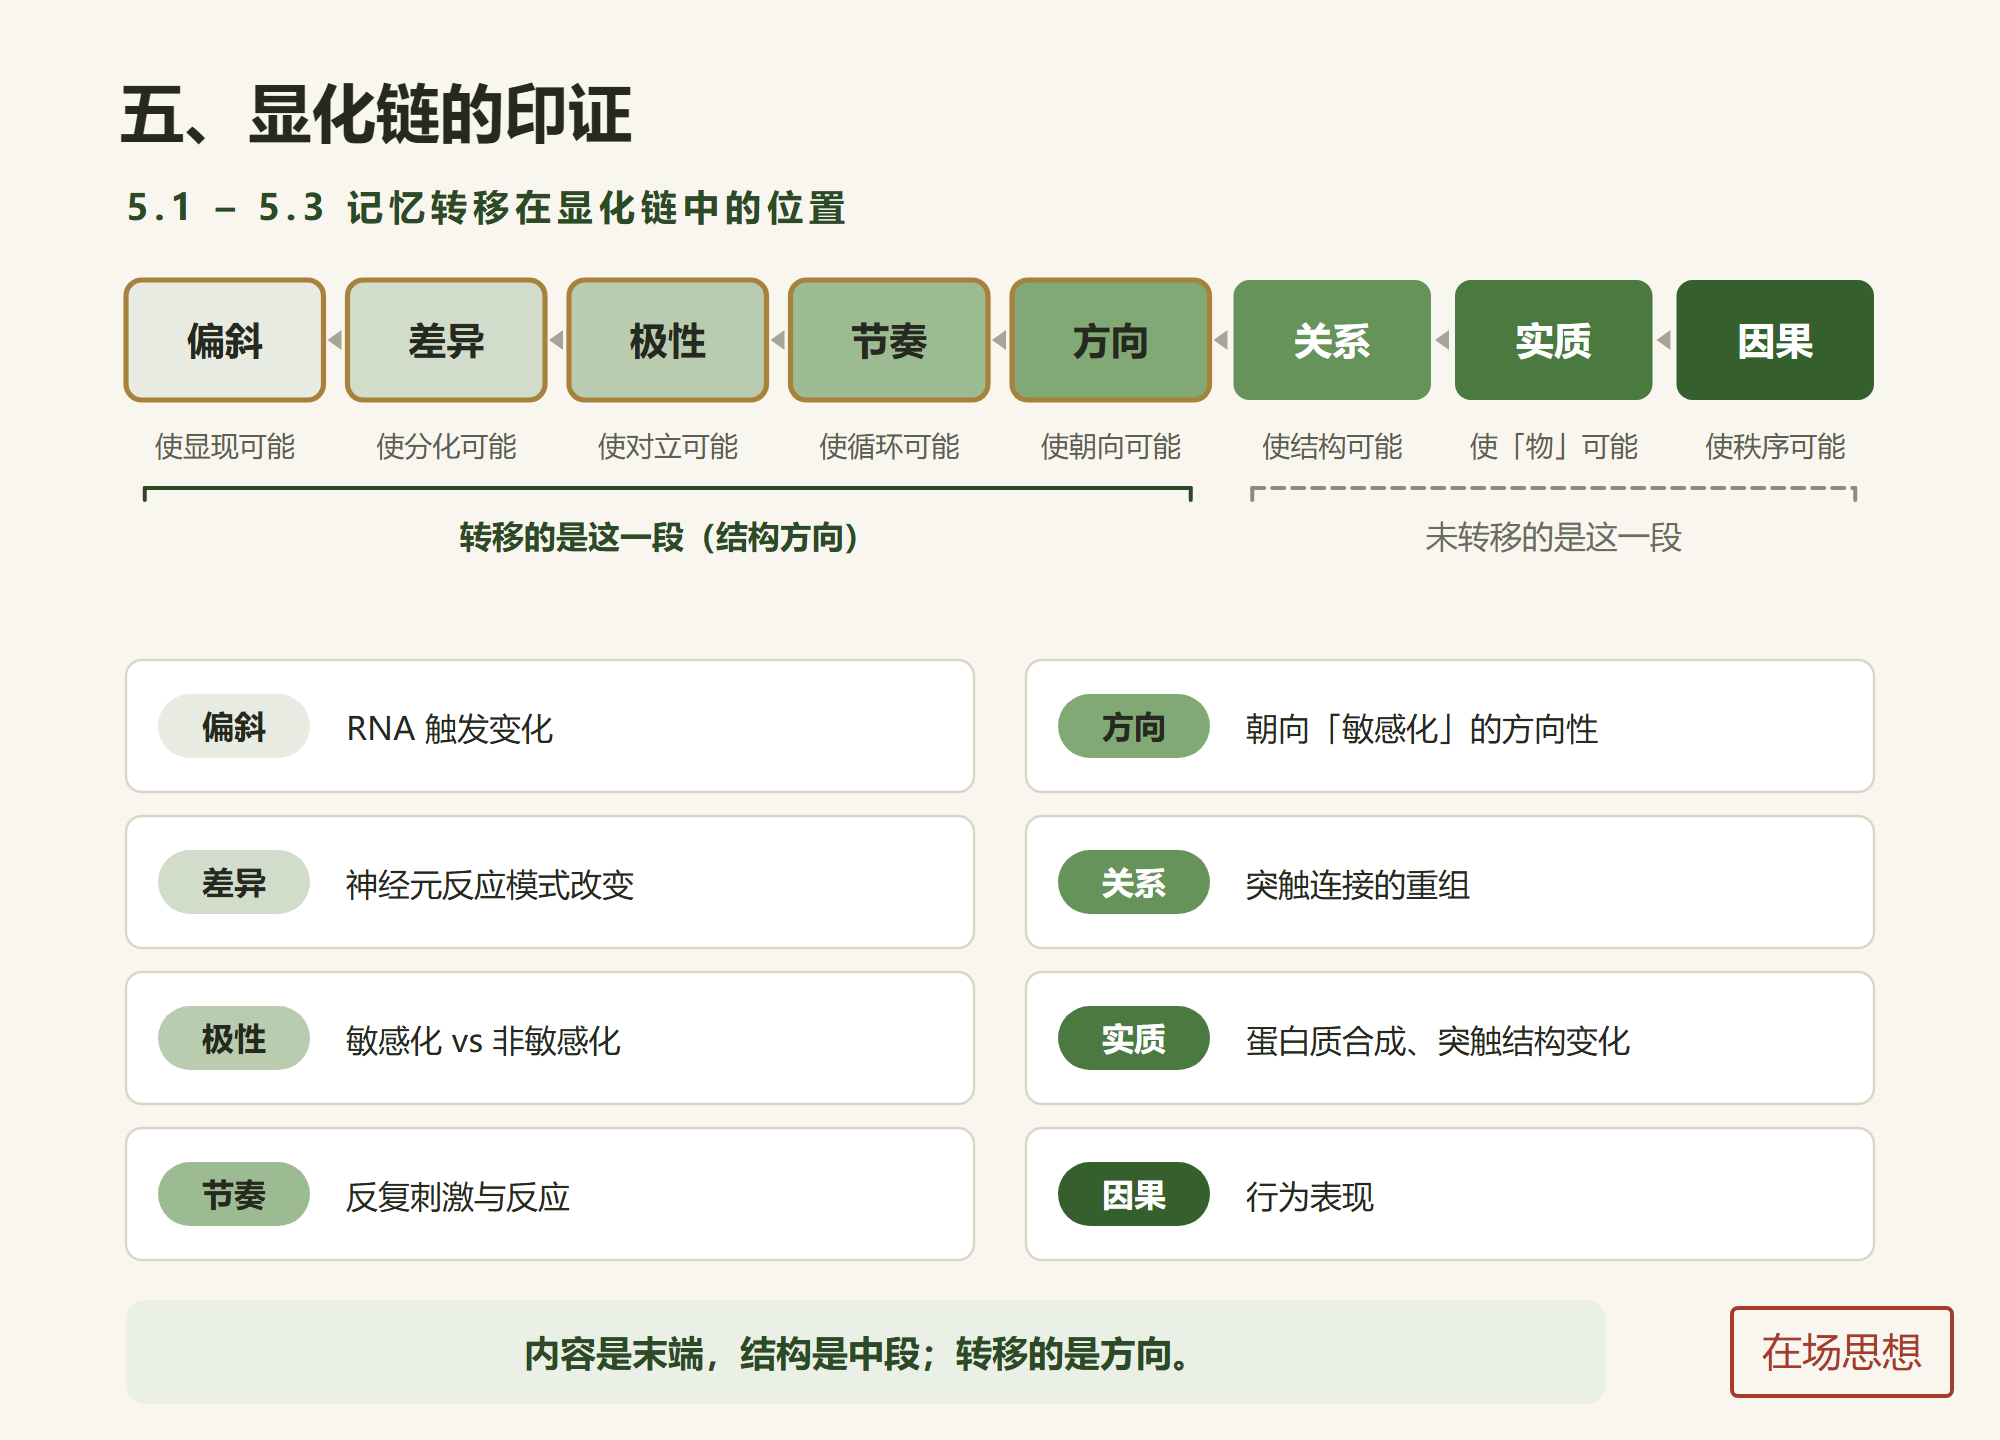
偏斜 → 差异 → 极性 → 节奏 → 方向 → 关系 → 实质 → 因果
5.2 记忆转移在显化链中的位置
| 显化链环节 | 记忆转移中的对应 |
|---|---|
| 偏斜 | RNA触发变化 |
| 差异 | 神经元反应模式改变 |
| 极性 | 敏感化 vs 非敏感化 |
| 节奏 | 反复刺激与反应 |
| 方向 | 朝向“敏感化”的方向性 |
| 关系 | 突触连接的重组 |
| 实质 | 蛋白质合成、突触结构变化 |
| 因果 | 行为表现 |
转移的是从偏斜到方向这一段,不是从方向到实质那一段。
5.3 核心判断
内容是显化链末端的显化,结构是显化链中段的方向性。转移的是方向,不是内容。
六、更深一层:结构为什么可以被转移
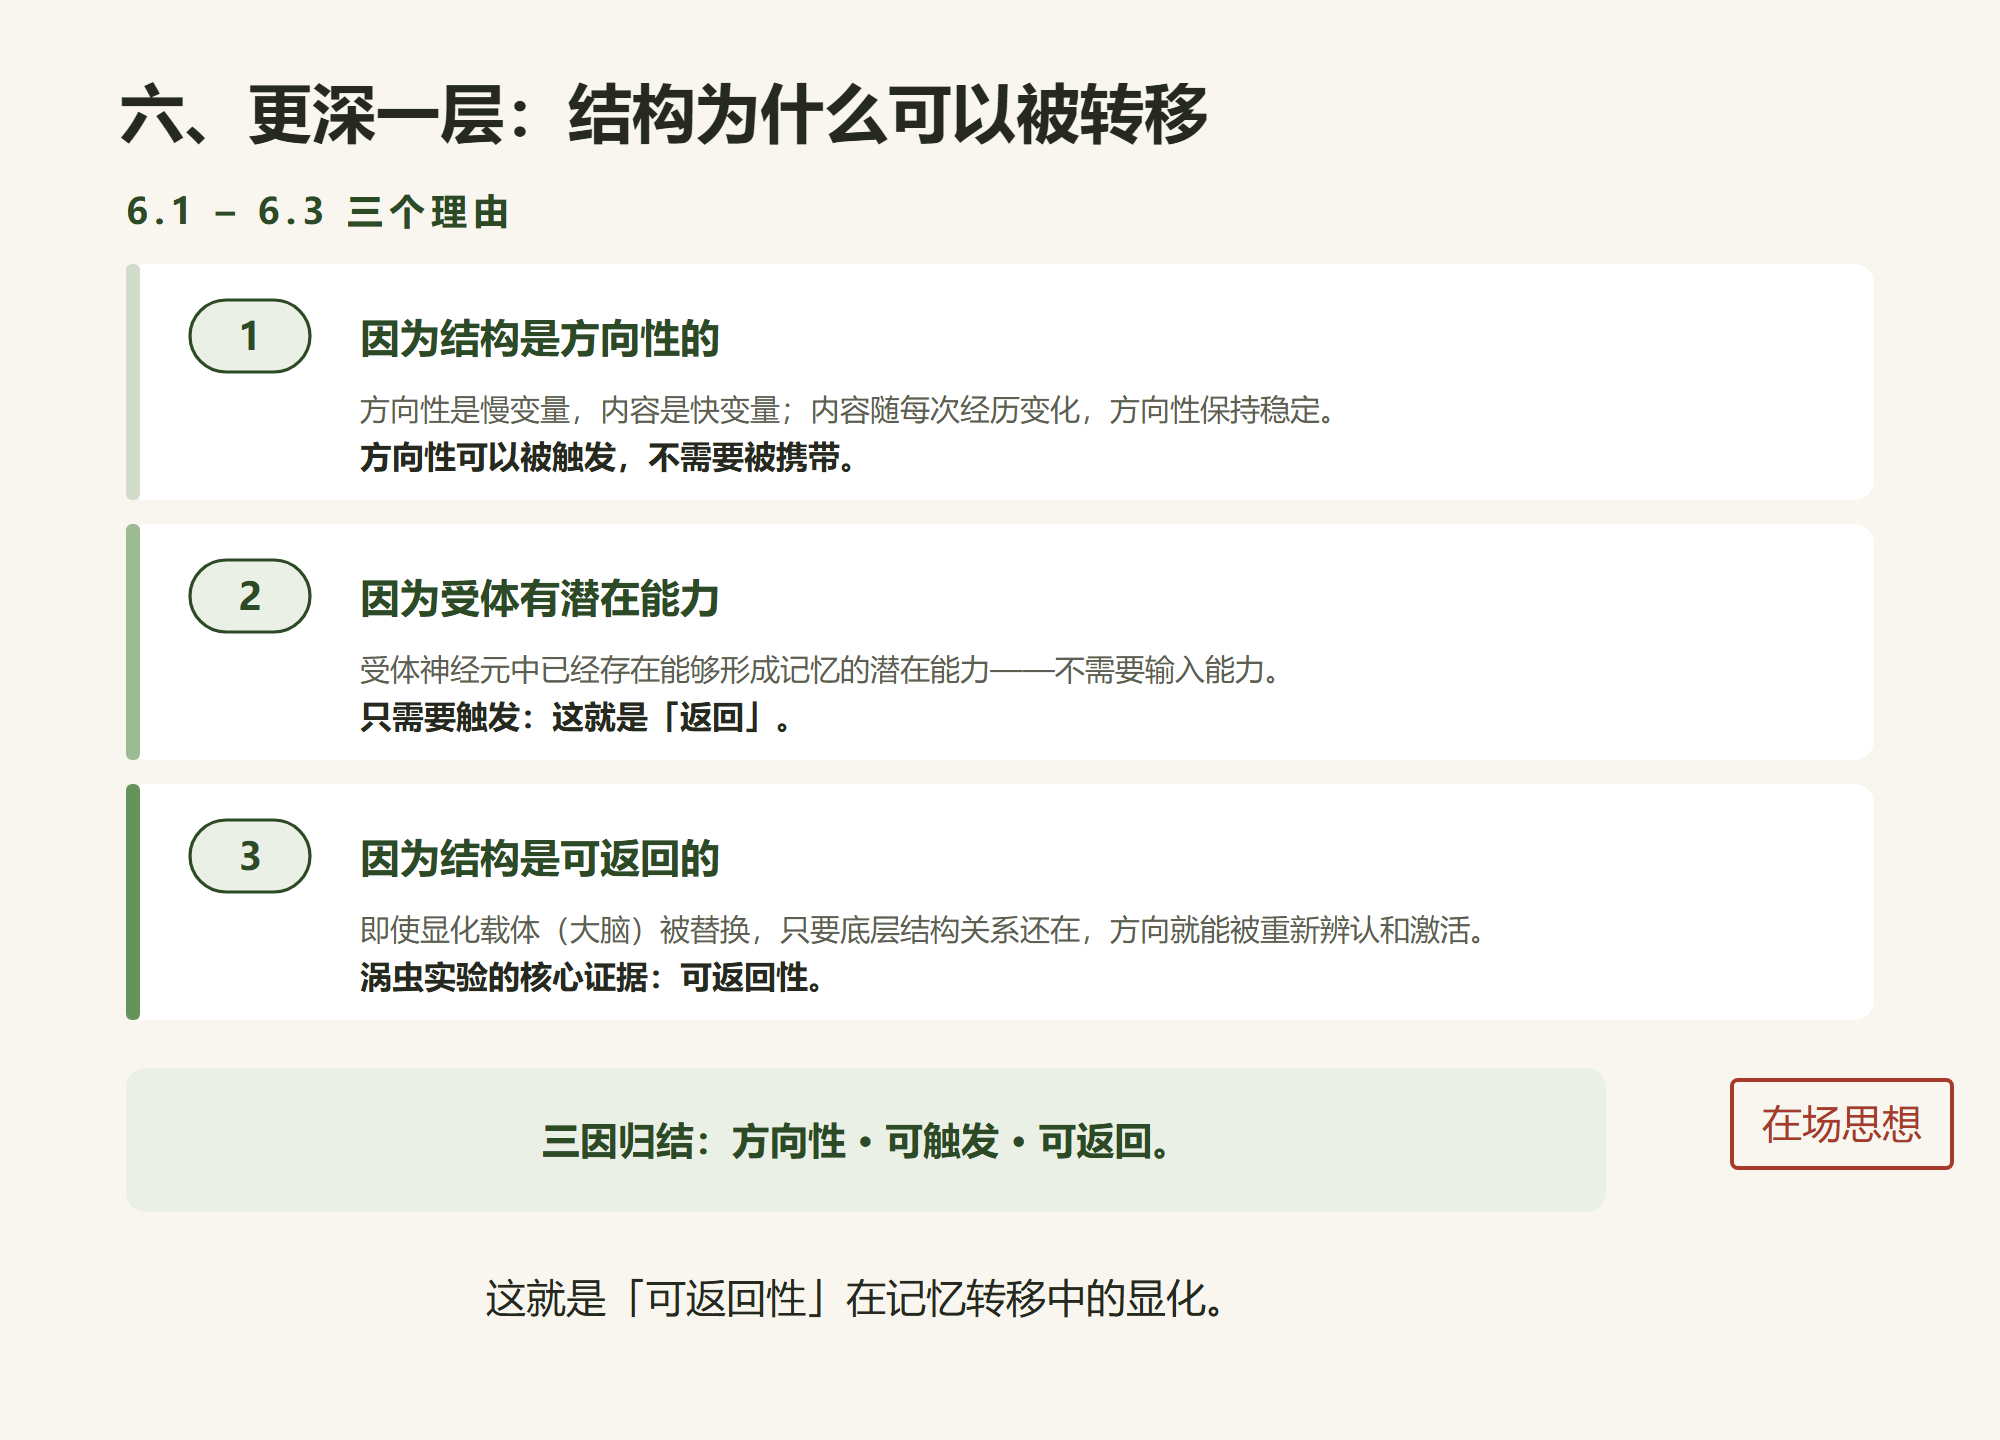
6.1 因为结构是方向性的
方向性是慢变量,内容是快变量。
内容随每次具体经历变化;
方向性在不同经历中保持稳定。
方向性可以被触发,不需要被携带。
6.2 因为受体有潜在能力
受体神经元中已经存在能够形成记忆的潜在能力。
不需要从外部输入能力;
只需要触发已有的能力。
这就是“返回”——受体返回到了它本来就有的潜在状态。
6.3 因为结构是可返回的
结构是可返回的:即使显化载体(大脑)被替换,只要底层的结构关系还在,方向就能被重新辨认和激活。
这就是“可返回性”——Shomrat & Levin实验的核心证据。
七、边界与风险
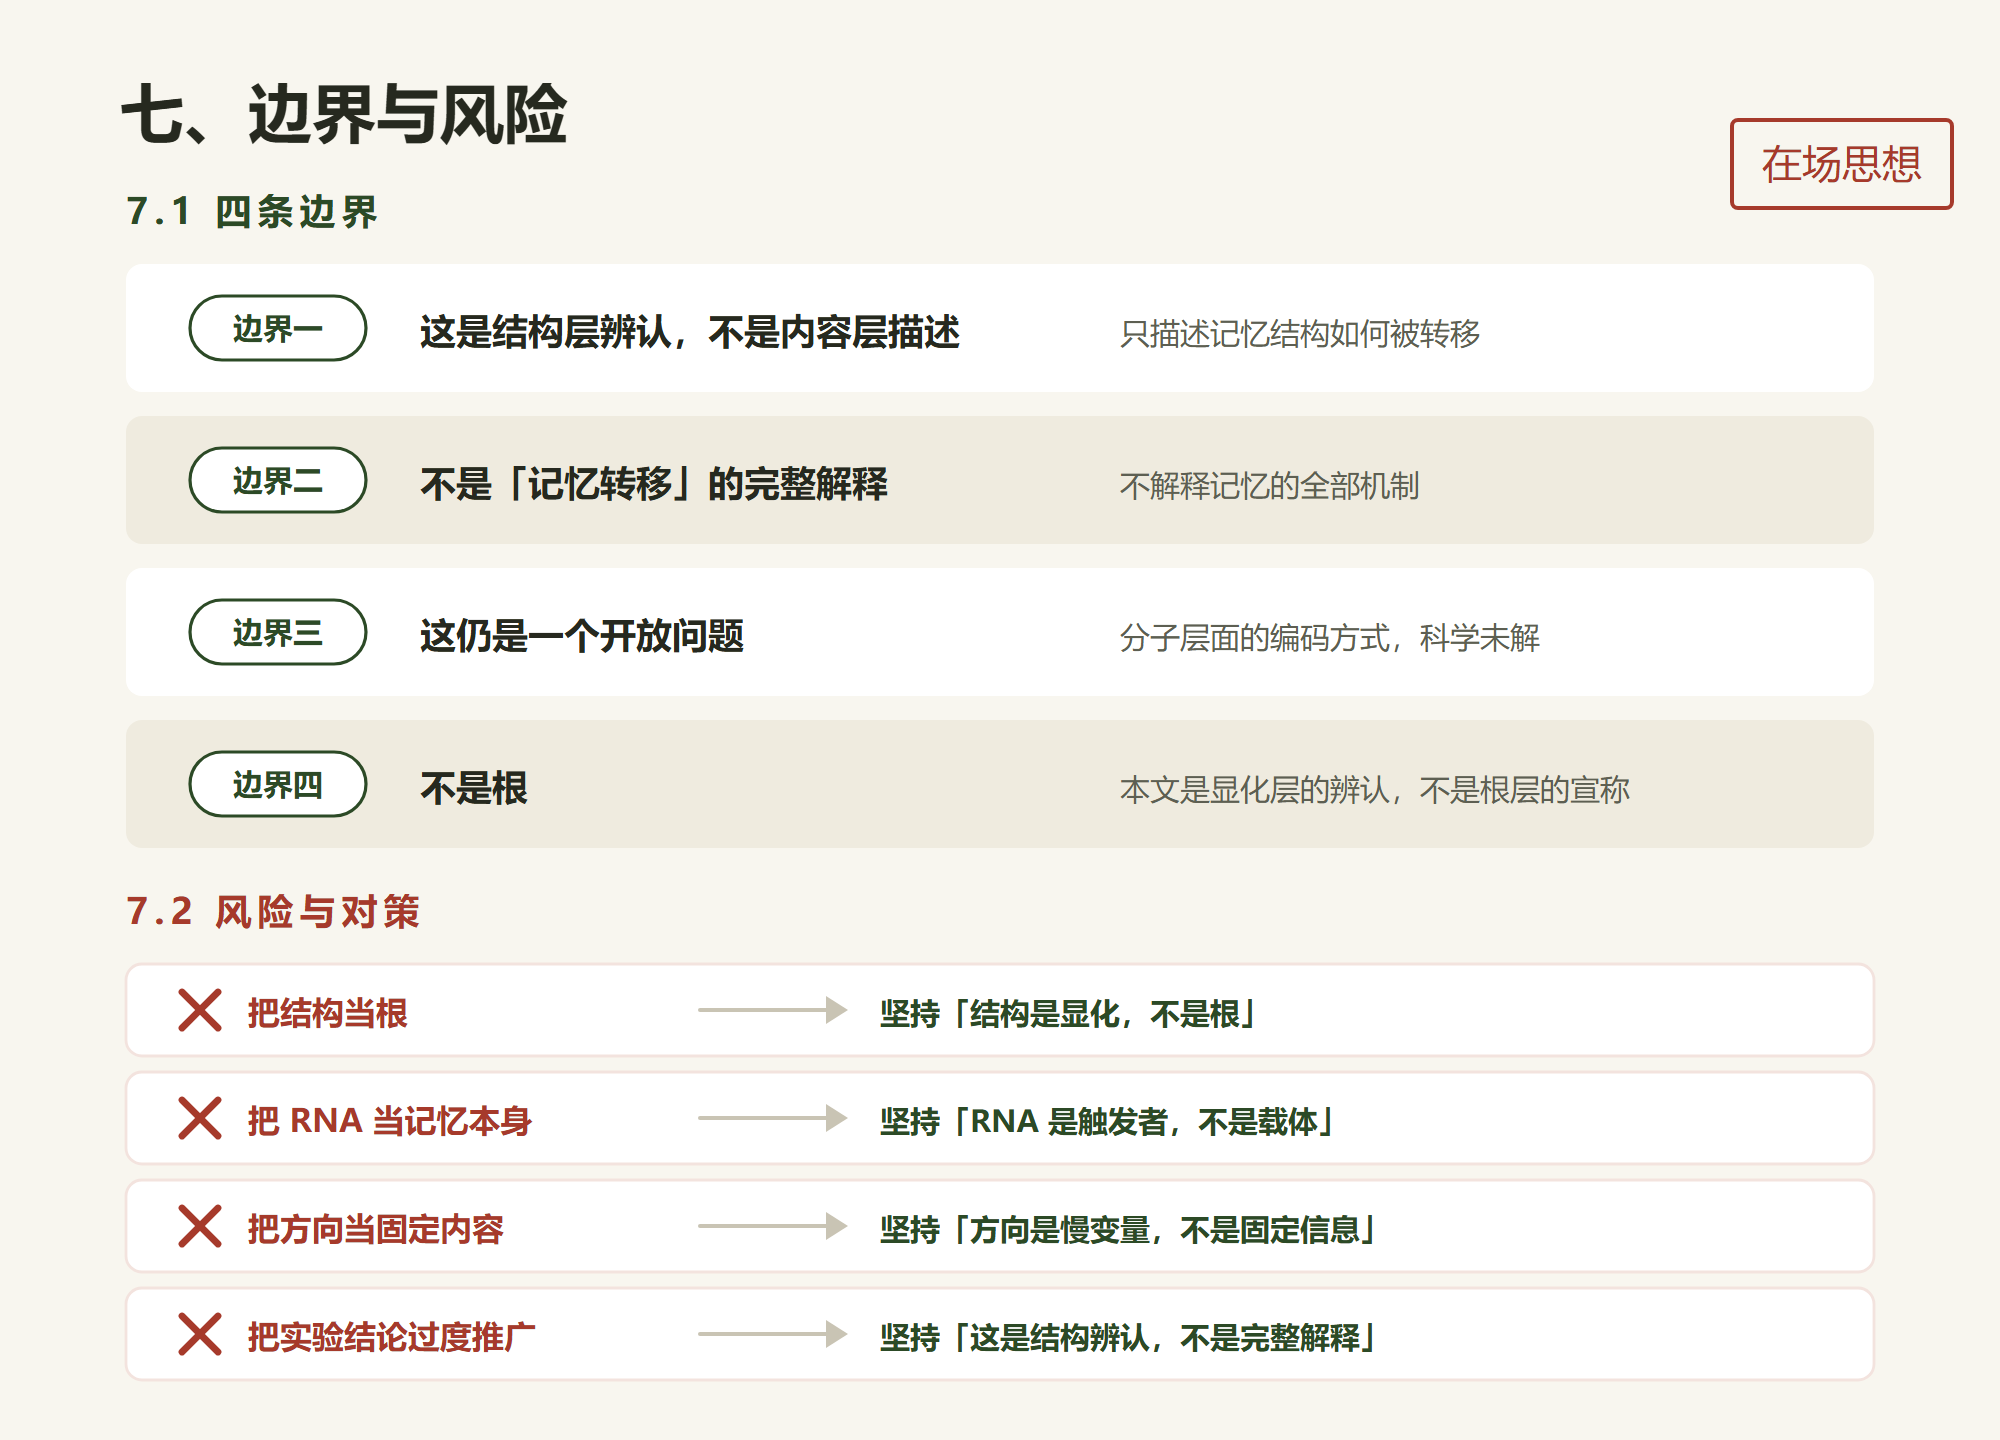
7.1 边界
边界一:这是结构层辨认,不是内容层描述。 本文不描述记忆内容如何形成,只描述记忆结构如何被转移。
边界二:这不是“记忆转移”的完整解释。 本文只辨认转移的是结构还是内容,不解释记忆的全部机制。
边界三:这仍是一个开放问题。 记忆的结构方向如何在分子层面被编码,仍是科学未解之谜。
边界四:不是根。 本文是显化层的辨认,不是根层的宣称。
7.2 风险
| 风险 | 对策 |
|---|---|
| 把结构当根 | 坚持“结构是显化,不是根” |
| 把RNA当记忆本身 | 坚持“RNA是触发者,不是载体” |
| 把方向当固定内容 | 坚持“方向是慢变量,不是固定信息” |
| 把实验结论过度推广 | 坚持“这是结构辨认,不是完整解释” |
八、结论
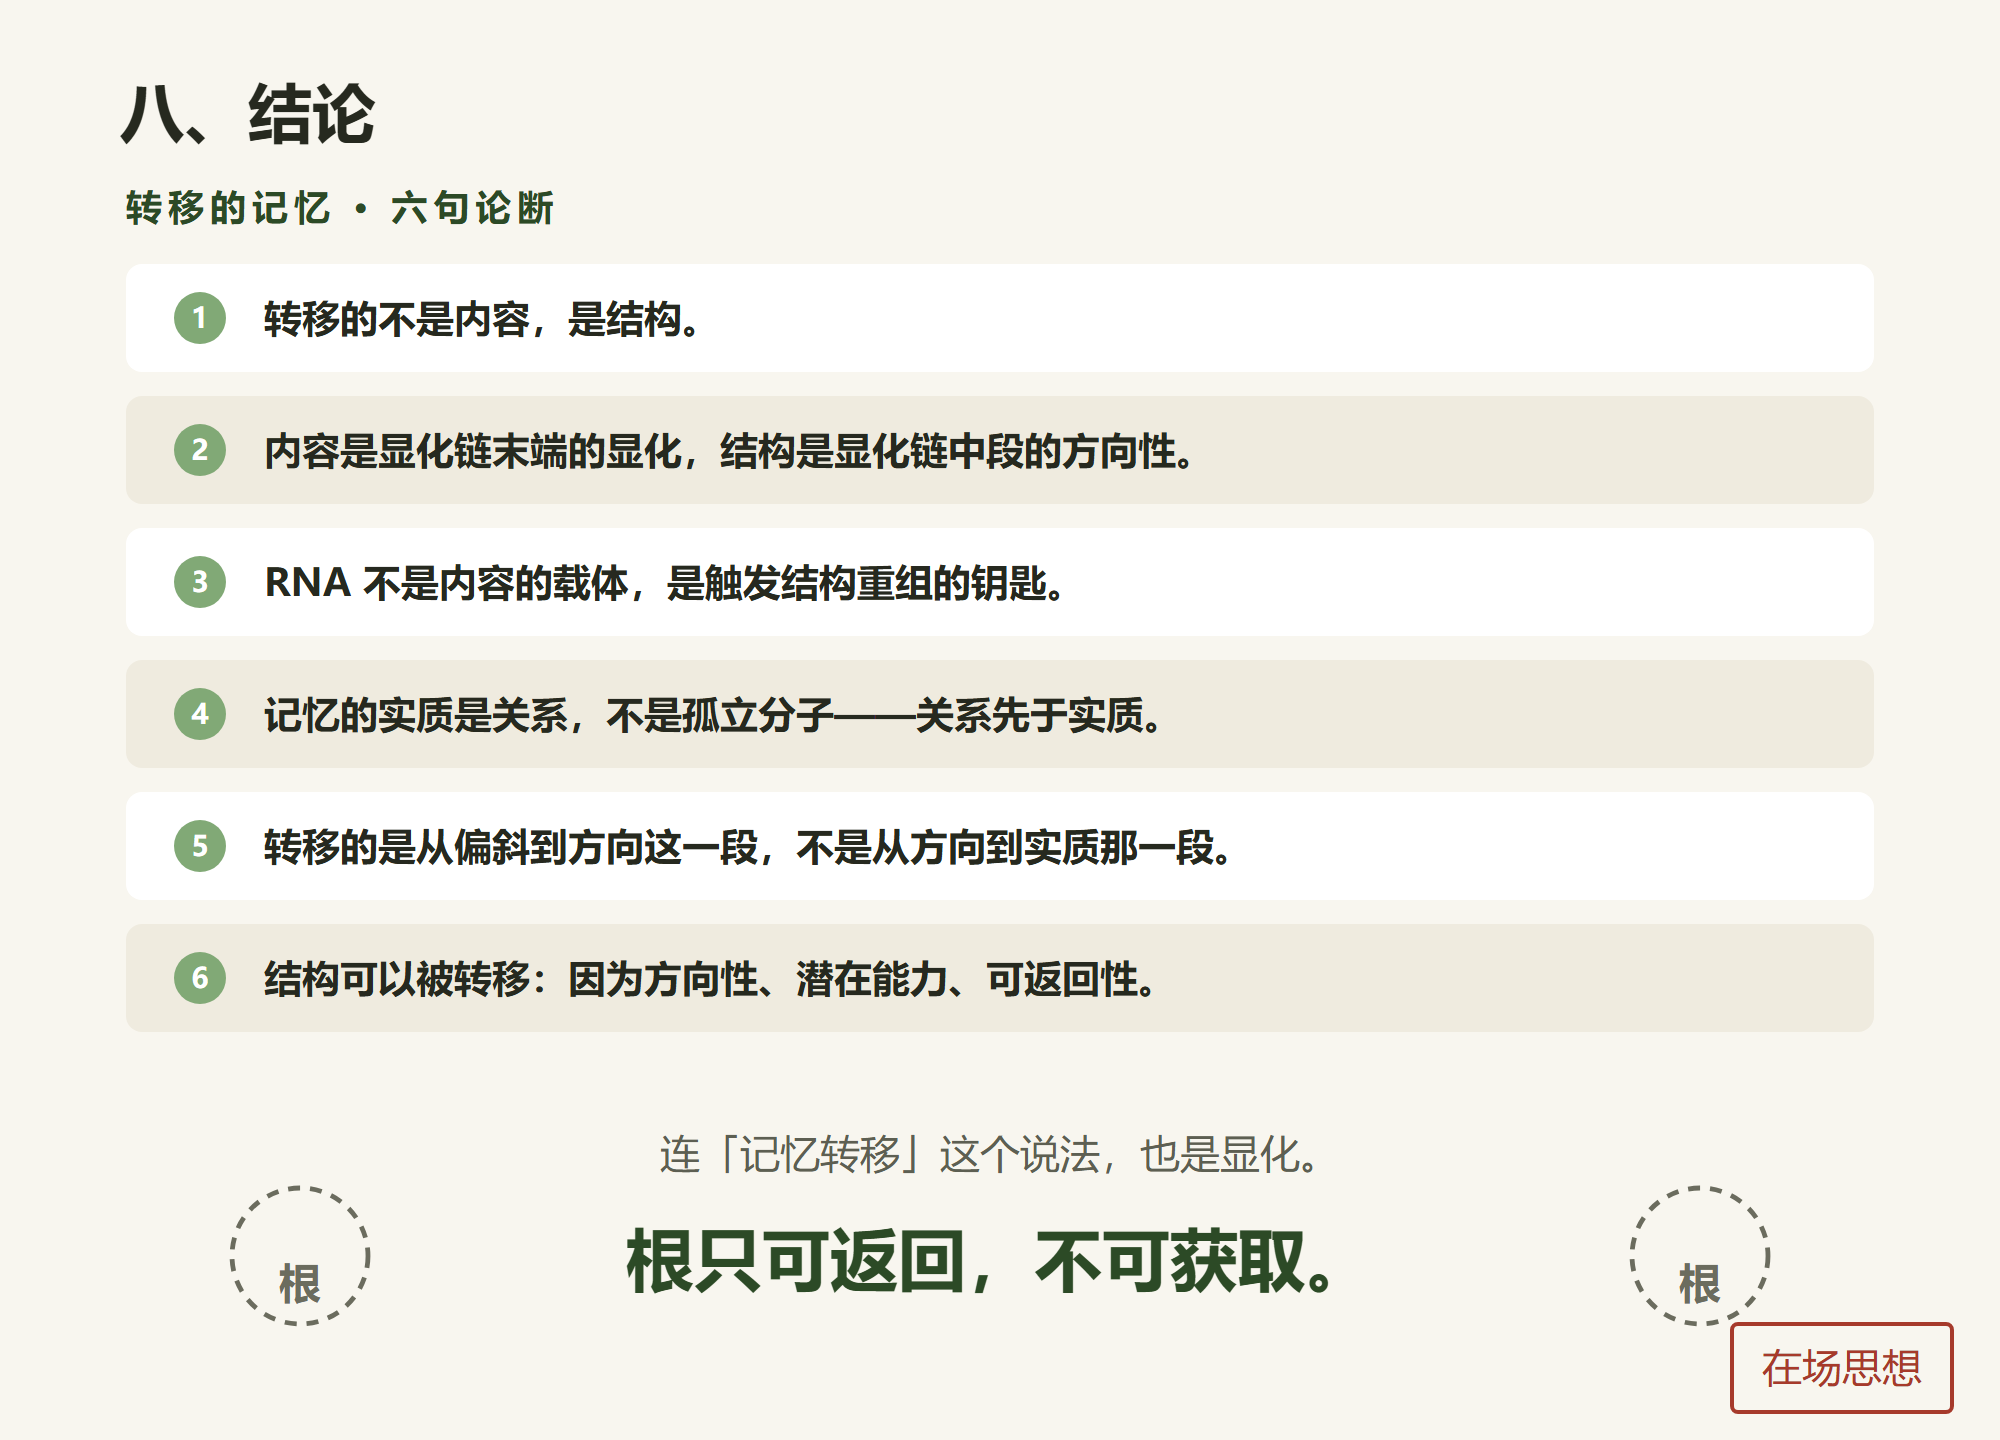
记忆转移实验中,转移的不是内容,是结构。
内容是显化链末端的显化,结构是显化链中段的方向性。
RNA不是内容的载体,是触发结构重组的钥匙。
记忆的实质是关系,不是孤立分子。关系先于实质。
转移的是从偏斜到方向这一段,不是从方向到实质那一段。
结构可以被转移,因为结构是方向性的,因为受体有潜在能力,因为结构是可返回的。
这就是“可返回性”在记忆转移中的显化。
连“记忆转移”这个说法,也是显化。
根只可返回,不可获取。
本文件是二级枝。上级是显化链。干是“显化永远不等于根”。根不在本文件中。